Hvordan ved immunceller, hvad de skal æde?
Når kroppens immunceller æder skadelige komponenter, spiller to specifikke proteiner (receptorer) en central rolle ved at genkende “spis mig”-signaler, som immunsystemet klistrer på de dødsdømte komponenter. Forskere forsøger at afdække den præcise struktur og funktion af disse receptorer, da det har perspektiver for forståelsen og behandlingen af sygdomme som Alzheimers.
Af Selma Thestrup Preisel, Kristian Juul-Madsen, Marlene Uglebjerg Fruergaard og Gregers Rom Andersen.
Vores immunsystem er konstant på arbejde for at fjerne celler i vores krop, der kan fremkalde sygdom. Det kan både være celler, der trænger ind i kroppen udefra eller celler i vores egen krop, der ikke længere fungerer, som de skal.
For at kunne udføre denne livsvigtige opgave er det afgørende, at immunsystemet kan genkende de potentielt sygdomsfremkaldende celler. Og det gør de ved hjælp af specifikke proteiner på overfladen af vores immunceller kaldet receptorer. Disse receptorer genkender specifikke mønstre på overfladen af de “mistænkelige” celler – det kan for eksempel være et bestemt protein på en bakterie.
På Aarhus Universitet arbejder vi i vores forskningsgrupper med to vigtige receptorer, der indgår i dette genkendelsessystem. De to receptorer kaldes mere specifikt for komplementreceptor 3 og 4, og de sidder på overfladen af en lang række immunceller fra det medfødte immunsystem.
I Gregers Rom Andersens forskningsgruppe forsøger vi at forstå komplementreceptorernes form, dynamik og funktion, så denne viden kan udnyttes i fremtidig behandling af sygdomme. I Kristian Juul-Madsens forskningsgruppe arbejder vi med at forstå, hvordan disse komplementreceptorer virker i forbindelse med de neurodegenerative sygdomme Alzheimers og Parkinsons.
Når immunsystemet æder skadelige celler
Komplementreceptorerne hedder sådan, fordi de hører til det såkaldte komplementsystem, der er en vigtig del af det medfødte immunsystem. Overordnet består komplementsystemet af en lang række proteiner, der findes i vores blod som frie molekyler og på vores immunceller som receptorer. Sammen med antistoffer og “ædeceller”, fagocytter, hjælper komplementsystemet med at fjerne sygdomsfremkaldende celler. Komplementsystemet kan, i modsætning til det adaptive immunsystem, ikke tilpasse sig, men til gengæld kan det reagere hurtigt.
Komplementreceptor 3 og 4’s rolle i dette system er at genkende et bestemt protein, som immunsystemet sætter på både vores egne døende celler og på indtrængende sygdomsfremkaldende organismer. Dette protein kaldes iC3b, og det fungerer som et “spis mig”-signal. Hver skadelig celle mærkes med mange iC3b-proteiner.
Når de to komplementreceptorer binder til iC3b, starter det en proces kaldet fagocytose. Her tilintetgør immuncellen den mærkede celle ved at omslutte den med sin cellemembran, for derefter at optage og til sidst nedbryde den.
Ved en infektion kan denne proces fjerne frie bakterier eller inficerede celler. Og når kroppen er i ligevægt (kaldet homøostase) opmærker og fjerner processen løbende vores egne døende celler, så disse ikke ophobes i kroppen. Den specifikke mærkning af skadelige og døende celler med iC3b sikrer altså, at immuncellerne ikke spiser kroppens raske celler.
Både komplementreceptor 3 og 4 kan også genkende andre mønstre end iC3b på overfladen af celler eller frie proteiner i kroppen. Det kan få immunceller til at binde sig til blodkarrene og øge dannelsen af nye blodkar, kaldet angionese, ind i omgivende væv.
Komplementreceptor 3’s konformationer
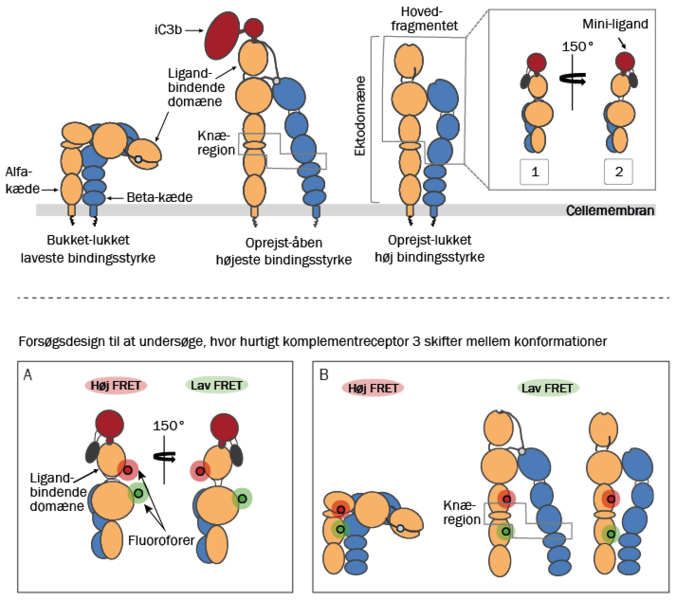
Komplementreceptor 3 består af flere såkaldte domæner skitseret med cirkler på figuren, som er rumligt afgrænsede dele af proteinet. Komplementreceptoren har tre konformationer – bukket-lukket, oprejst-åben og oprejst-lukket – der styrer bindingsstyrken til liganden.
Kassen øverst til højre illustrerer, hvordan det ligand-bindende domæne kan dreje mellem to orienteringer, mens liganden stadig sidder på. Af tekniske grunde har vi opdaget dette ved at bruge en mini-ligand til strukturbestemmelsen. Når vi laver biofysiske målinger på receptoren, måler vi typisk kun på ektodomænet eller på den yderste del af det over “knæregionen”.
På den nederste figur ses, hvordan vi ud fra vores atomare modeller af komplementreceptor 3 kan undersøge den tidslige dynamik i receptoren ved hjælp af enkelt-molekyle FRET (se senere boks). Her kobler vi to fluoroforer på receptoren på veldefinerede positioner. Den grønne fluorofor (donor) kan, når den er tæt på den røde fluorofor (acceptor), overføre energi, som denne kan optage og udsende med en endnu længere bølgelængde end donoren. Jo tættere, de to fluoroforer er på hinanden, jo mere energi overføres og jo højere FRET, måler vi. Vi designer nu forsøgene sådan, at de to fluoroforer er tæt på hinanden, når receptoren er i én konformation, og langt fra hinanden, når de er i en anden. På den måde kan vi følge, hvor hurtigt receptoren skifter mellem konformationerne.
Figuren viser to mulige forsøgsdesign:
I A er de to fluoroforer placeret på komplementreceptor 3’s hovedfragment for at følge rotationen af det ligand-bindende domæne. Vi forventer, at denne bevægelse er hurtig.
I B er de placeret, sådan at vi kan følge bøjningen i receptorens knæregion. Da denne bevægelse kræver bevægelse af flere domæner, forventer vi, at den er langsommere end rotationen af et enkelt domæne.
Komplementreceptor 3 under mikroskopet
Når vi kigger nærmere på de to komplementreceptorer (3 og 4), så er de selv proteinmolekyler opbygget af to aminosyrekæder; kaldet alfa- og betakæden. Betakæden er ens i de to komplementreceptorer, mens deres alfakæder er forskellige. Tilsammen danner de to kæder receptormolekylet, som har form som et par ben, hvor “fødderne” er forankret i cellemembranen på immuncellen. Den del af receptoren, der sidder udenfor cellemembranen, kaldet ektodomænet, kan ligesom et par ben bøjes, fordi en region af molekylet fungerer som et par knæ, eller hængsler.
For begge receptorer gælder, at selve bindingen til deres partnermolekyle – kaldet liganden, som i forbindelse med fagcoytose er iC3b – sker med en helt central region af receptoren kaldet det ligand-bindende domæne.
I vores forskning har Josefine Lorentzen og Marlene Uglebjerg Fruergaard studeret denne region af komplementreceptor 3 ved hjælp af en teknik kaldet kryogen elektronmikroskopi for at blive klogere på bindingen mellem receptoren og dets partnerprotein iC3b.
Med denne teknik kan vi opnå stillbilleder af den tredimensionelle struktur af receptoren, og vi kan beskrive positionerne af atomerne i hvert stillbillede. På den måde opnår vi en meget detaljeret materiel forståelse af, hvilke forskellige strukturer, kaldet konformationer, proteinet kan antage.
Vi fandt til vores overraskelse, at det ligand-bindende domæne kunne optræde i to forskellige orienteringer i forhold til resten af receptormolekylet, hvilket ikke er set før indenfor denne receptorfamilie. Domænet kan således rotere 150° relativt til resten af proteinet.
Når immunceller spiser, fagocyterer, andre celler, krænges immuncellens cellemembran rundt om målcellen, indtil denne er helt omsluttet. Derfor må orienteringen mellem immuncellens komplementreceptor 3 og liganden iC3b på den celle, der bliver spist, alt andet lige være variabel. En mulig forklaring på, at det ligand-bindende domæne kan rotere, kan derfor være, at receptoren på den måde effektivt kan holde fast i iC3b under fagocytose.
Enkelt-molekyle-FRET
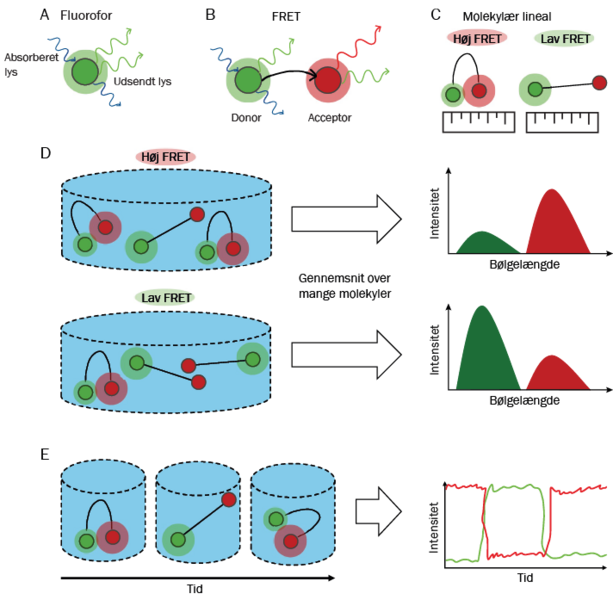
Man kan følge en defineret bevægelse i et biomolekyle ved at lave en slags molekylær lineal. Her udnytter man en type af molekyler kaldet fluoroforer.
En fluorofor er et molekyle, der absorberer lys ved en bølgelængde og udsender en del af lyset ved en længere bølgelængde med lavere energi (A). For at lave den molekylære lineal udnytter man et fænomen kaldet Förster-resonans-energioverførsel (FRET). Her bruges to fluoroforer samtidigt, en donor og en acceptor. Hvis de to er tæt på hinanden, kan donoren overføre energi til acceptoren, som denne så kan udsende som lys som vist i B og C. Jo tættere de to fluoroforer er på hinanden, des mere energi overføres til acceptoren.
Vi kan også måle, hvor meget lys, acceptoren og donoren udsender hver især. For at måle afstande i et protein kobler man de to fluoroforer på veldefinerede positioner i proteinet. Antag nu, at i en konformation af proteinet er de to fluoroforer tæt på hinanden (høj FRET) og i en anden langt fra hinanden (lav FRET). Hvis man måler på en sådan prøve samlet (D), kan vi få information om, hvor mange molekyler der er i hver konformation (fordeling). Men i en prøve er der mange molekyler, der giver signal samtidigt. For at følge, hvor lang tid et enkelt proteinmolekyle er i hver konformation, skal man derfor måle FRET på enkel-molekyle niveau (E).
På vej mod en dybere forståelse
Udover de nye konformationer for komplementreceptor 3, som vi opdagede, ved man, at receptoren kan indtage tre overordnede konformationer, som bestemmer styrken af bindingen mellem receptoren og liganden (dvs. iC3b). Den laveste bindingsstyrke er i en konformation, hvor receptoren er bøjet i “knæene”, hvilket placerer det ligand-bindende domæne tæt på cellemembranen. I de to andre konformationer med højere bindingsstyrke er receptoren strakt ud, så det ligand-bindende domæne løftes væk fra cellemembranen. I den ene konformation er receptorens to “ben” samlet, mens de er adskilt i konformationen med den højeste bindingsstyrke.
Hvis vi gerne vil endnu dybere i forståelsen af, hvad der sker, når komplementreceptor 3 binder sig til iC3b-liganden, har vi brug for at undersøge den tidslige dimension – altså hvordan og hvor hurtigt strukturelle ændringer i receptoren sker.
Det arbejder vi nu på at belyse ved hjælp af en anden teknik kaldet enkelt-molekyle FRET. Her kan vi udnytte vores detaljerede viden om de konformationer, som receptoren kan indtage. Ud fra vores atomare modeller kan vi finde to positioner, der er tæt på hinanden i den ene konformation og langt fra hinanden i den anden konformation. På disse positioner kan vi placere særlige fluorescerende molekyler, der gør det muligt at måle deres indbyrdes afstand som funktion af tiden.
Når vi gerne vil forstå, hvordan komplementreceptor 3 opfører sig, er det blandt andet fordi, det kan hjælpe os med at forklare, hvorfor visse mutationer kan lede til sygdom. For eksempel ved vi, at en bestemt mutation i komplementreceptor 3 giver høj risiko for at få den autoimmune sygdom Systemisk Lupus Erythematosus (SLE), der er en kronisk betændelsessygdom. På længere sigt kan den detaljerede forståelse af receptorens dynamiske egenskaber måske medvirke til at udvikle lægemidler til behandling af denne sygdom.
Når affaldsstoffer giver sygdom
Der er formentligt mange andre sygdomme, som vi kunne blive klogere på og bedre til at behandle ved at forstå, hvordan de to komplementreceptorer fungerer. Et oplagt sted at kigge hen er sygdomme, hvor ophobning af “affaldsstoffer” spiller en central rolle i sygdommens udvikling.
Blandt disse er demenssygdomme som Alzheimers og Parkinsons, der rammer mere end 10.000 nye patienter hvert år i Danmark alene.
En central hypotese for udviklingen af begge disse sygdomme er den såkaldte “amyloid-kaskade hypotese”. Den beskriver, hvordan proteinerne amyloid-beta for Alzheimers og alfa-synuclein for Parkinsons kan samle sig (aggregere) primært i hjernen men også i blodet til først små proteinklynger og senere til lange fibriller og plak kaldet amyloider.
Denne aggregering giver den termodynamisk mest stabile struktur for proteinerne, og derfor er der tre faktorer, der spiller en rolle for udviklingen af aggregaterne – tid, temperatur og koncentration.
Tidsfaktoren er en af årsagerne til, at sygdommen udvikler sig i et meget langstrakt forløb.
Temperaturen er i praksis konstant i den menneskelige krop og spiller derfor en mindre rolle i denne sammenhæng.
Koncentration er til gengæld reguleret af en lang række faktorer, blandt andet i hvor høj grad proteinerne produceres, og dernæst med hvilken hastighed de fjernes igen, når de har udtjent deres normale rolle. Og her kommer funktionen af komplementreceptorer ind i billedet.
Komplementreceptorer som mål for sygdomsbehandling
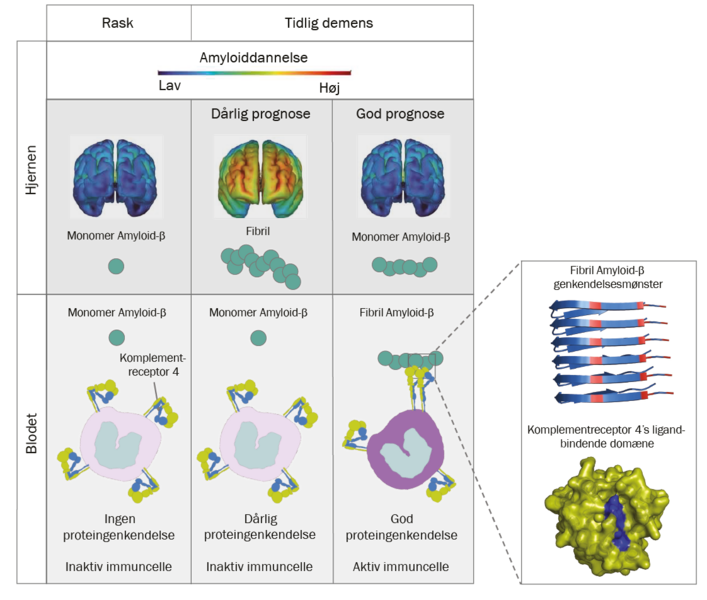
Det er velkendt, at komplementreceptor 3 spiller en generel rolle i at genkende og fjerne både små og store aggregater af amyloid-beta og alfa-synuclein. Men for nylig har man også opdaget, at komplementreceptor 4 er en central spiller i fjernelsen af særligt de større aggregater, der er associeret med sygdom.
Komplementreceptor 4 kan genkende de molekylære mønstre, som opstår, når amyloider dannes, og denne genkendelse kan udløse flere effekter, som kan bremse demenssygdommes udvikling. Først og fremmest kan genkendelsen lede til, at der optages mere amyloid i immunceller, som derefter nedbryder proteinerne, inden de aggregerer yderligere.
Dernæst kan genkendelsen lede til, at flere immunceller binder sig til celler og væv, hvor amyloid-aggregaterne sidder. I særligt Alzheimers er dette relevant, da mange patienter danner amyloid i deres blodkar i hjernen. Når komplementreceptor 4 genkender disse amyloider i hjernens blodkar, kan det lede til, at flere immunceller strømmer fra blodet og ind i hjernen og hjælper med at bremse sygdommens udvikling der.
I Kristian Juul-Madsens forskningsgruppe, opdagede vi, at amyloid kan detekteres i blodet fra patienter med tidlige tegn på sygdommen. Immunsystemet kan reagere på de små mængder amyloid i blodet ved at skrue op for produktionen og aktiviteten af komplementreceptor 4 i immunceller. Det har samtidig vist sig, at patienter med mange immunceller med høj aktivitet af komplementreceptor 4, danner mindre amyloid i hjernen og dermed har en bedre prognose end patienter, der har få af disse immunceller. Det modsatte gør sig gældende i patienter med en dårlig prognose. De danner meget amyloid i hjernen, men ikke så meget i blodet, og derfor har de en lav aktivitet af komplementreceptor 4.
Tilsammen peger disse fund på, at komplementreceptorer bidrager til den positive prognose, vi ser hos patienter med lav amyloiddannelse i hjernen.
Vores forskning er derfor nu fokuseret på at afprøve denne ide og undersøge potentialet for at udvikle en egentlig behandling mod de tidligere udviklingsstadier af Alzheimers. ♦
Kryogen elektronmikroskopi
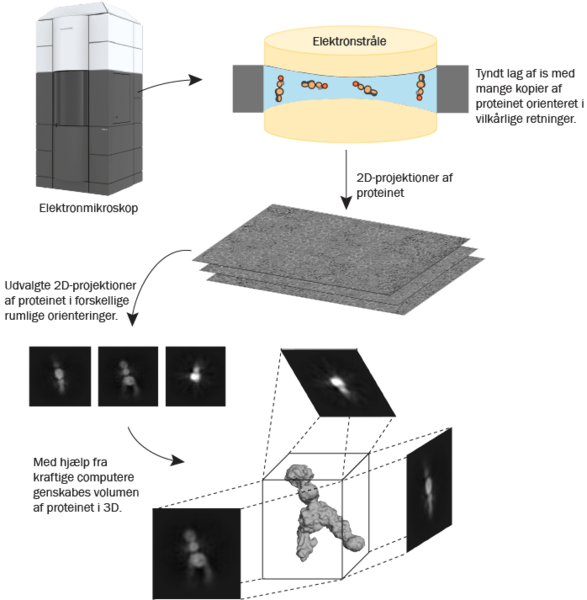
Et proteins funktion er bestemt af dets tredimensionelle form (struktur), og hvordan det bevæger sig (dynamik). Vi kan se immunceller under et normalt lysmikroskop, men vi kan ikke direkte se komplementreceptorerne.
Når vi vil studere strukturen af biomolekyler såsom proteiner, er kryogen elektronmikroskopi en udbredt metode. Her fryser vi først en prøve med det protein, vi ønsker at studere, meget hurtigt ned, så isen bliver klar som glas. Prøven indeholder mange kopier af proteinet, og når prøven er frosset i et meget tyndt lag is, vil proteinet derfor optræde i mange forskellige orienteringer i prøven.
Herefter bruger vi et elektronmikroskop til at skyde en elektronstråle igennem den tynde is. Elektronerne fra strålen vekselvirker med proteinernes elektroner, og på en detektor placeret på den anden side af prøven vil dette kunne ses som 2D-projektioner af proteinet. Hver orientering af proteinet vil udmønte sig i en 2D-projektion, der er forskellig fra andre orienteringer. Og når man har rigtig mange af disse 2D-projektioner, kan man rekonstruere et tredimensionelt volumen af proteinet i prøven.
Til sidst tilpasser vi en atomar model af proteinet ind i dette volumen. Denne atomare model repræsenterer den tredimensionelle struktur af proteinet og beskrives med en såkaldt koordinatfil. I denne er hvert enkelt atom beskrevet med en position i et standard-koordinatsystem samt en temperaturfaktor, der angiver hvor meget atomet bevæger sig.
Se artiklen: Hvordan ved immunceller, hvad de skal æde? som pdf
Forfatterne

Selma Thestrup Preisel
Ph.d.-studerende ved Institut for Molekylærbiologi og Genetik, Aarhus Universitet. Forsker i komplementreceptorer med fokus på struktur og dynamik.
stp@mbg.au.dk
Kristian Juul-Madsen
Adjunkt ved Institut for Biomedicin, Aarhus Universitet, Aarhus Universitet. Forsker i proteinaggregater ved Alzheimers sygdom.
juul-madsen@biomed.au.dk
Marlene Uglebjerg Fruergaard
AC-TAP ved Institut for Molekylærbiologi og Genetik, Aarhus Universitet. Forsker i komplementreceptorer med fokus på struktur og dynamik.
marlenef@mbg.au.dk
Gregers Rom Andersen
Professor ved Institut for Molekylærbiologi og Genetik, Aarhus Universitet. Forsker i komplementreceptorer og konvertaser i komplementsystemet med fokus på struktur og dynamik.
gra@mbg.au.dk
Videre læsning
Vorup-Jensen T., Jensen RK. Structural Immunology of Complement Receptors 3 and 4. Front Immunol. 2018 Nov 26;9:2716. DOI: doi.org/10.3389/fimmu.2018.02716
Josefine Lorentzen et al. ,Three cryo-EM structures of complement C3d-bound αMβ2 reveal an unexpected layer of dynamics for αI-containing integrin receptors. Sci. Adv.12,eaea7241(2026). DOI: doi.org/10.1126/sciadv.aea7241
Juul-Madsen, K., Parbo, P., Ismail, R. et al. Amyloid-β aggregates activate peripheral monocytes in mild cognitive impairment. Nat Commun 15, 1224 (2024). DOI: doi.org/10.1038/s41467-024-45627-y
Intropakke
Intropakke
Tilbud til nye abonnenter:
Bestil en intropakke med otte helt nye numre plus abonnement i et år (6 numre) for kun 354,- kr. inkl. porto & ekspedition. Bestil via: abonnementssiden.